La adaptación sensorial: por qué tus receptores se callan cuando nada cambia
Meissner, Pacini, Merkel, Ruffini: por qué algunos receptores se callan bajo un apoyo constante y qué cambia eso para tu medición en sesión.
El espacio de formación RNP, gratis de por vida
Accede a las formaciones RNP, sin compromiso.
Una mano apoyada sobre una mesa acaba por no sentir casi la mesa. Este silencio tiene una fisiología precisa, y dice mucho de lo que un apoyo sostenido envía al sistema nervioso.
Hola a ti, el profesional del movimiento,
Apoya la mano plana sobre la mesa, ahora mismo. No te muevas y cuenta despacio hasta diez. La mesa bajo tu palma palidece, se vuelve borrosa, casi ausente. Desliza un dedo dos milímetros: vuelve de golpe, nítida, con su grano.
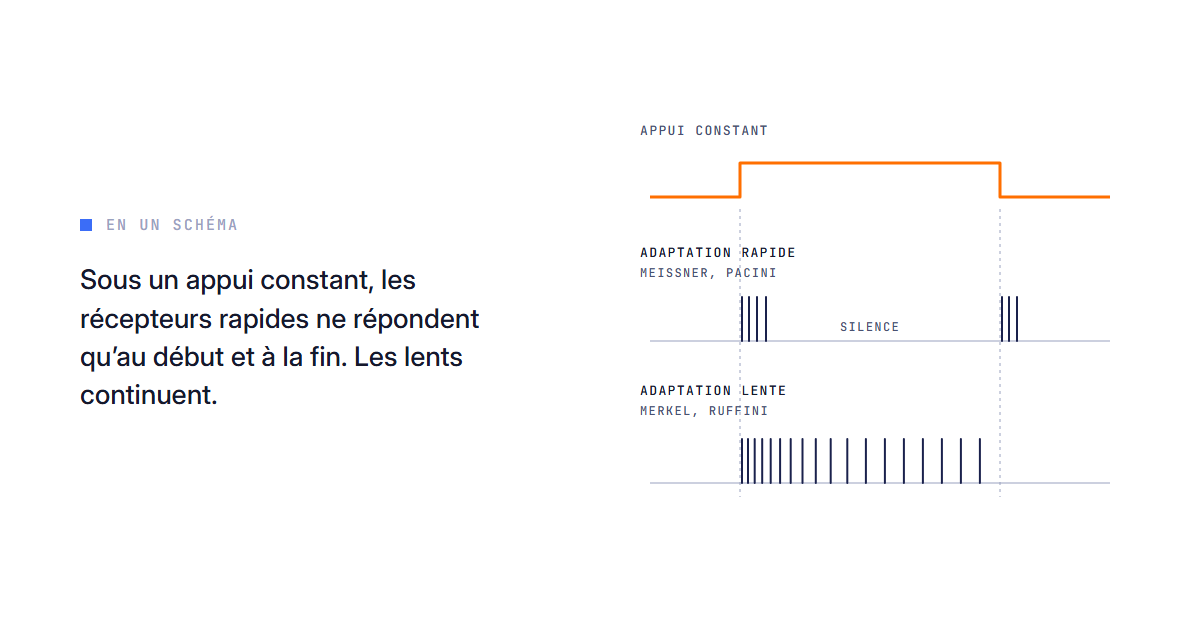
Lo que acabas de sentir se llama adaptación sensorial. Un receptor sometido a un estímulo que ya no cambia descarga cada vez menos. Algunos, como los corpúsculos de Meissner y de Pacini, se adaptan rápido y solo señalan el cambio; otros, como los discos de Merkel y las terminaciones de Ruffini, se adaptan despacio y siguen señalando lo que dura (Purves et al., 2004, cap. 8).
Ya nos cruzamos con este mecanismo en nuestro artículo sobre las cosquillas que desaparecen tras treinta segundos de presión. Fisiología de primer año, dirás. Sin embargo, afecta a tu medición: si evalúas a una persona justo después de un apoyo prolongado, parte de lo que registras procede del estado de sus receptores en ese segundo preciso.
Bajo tu palma inmóvil, ¿quién se ha callado y quién seguía hablando?
Receptores de adaptación rápida y lenta: quién codifica qué
La piel glabra, la de la palma y la planta del pie, lleva cuatro familias de mecanorreceptores de umbral bajo (Purves et al., 2004, cap. 8; Enoka, 2008, cap. 7). Los corpúsculos de Meissner, justo bajo la epidermis, descargan al comienzo y al final de un contacto y luego se callan durante la fase sostenida; prefieren las vibraciones lentas, de 30 a 50 Hz, las de una textura que desfila bajo el dedo. Los corpúsculos de Pacini, más profundos, se adaptan todavía más rápido y responden a las vibraciones rápidas, de 250 a 350 Hz. Son los llamados receptores fásicos.
Los discos de Merkel y las terminaciones de Ruffini, en cambio, mantienen su descarga mientras dura el estímulo: la forma y los bordes de lo que presiona los primeros, el estiramiento de la piel y su dirección las segundas (Enoka, 2008, cap. 7). Se les llama tónicos.
En tu mano, al cabo de diez segundos, Meissner y Pacini se habían callado mientras Merkel y Ruffini repetían la misma información. Los dos milímetros de deslizamiento despertaron a los rápidos.
Un receptor de adaptación rápida señala una transición, nunca un estado.
Sostener un objeto y sentir que se resbala: por qué el cuerpo conserva las dos familias
Coge un vaso. Inmóvil en tu mano, sigue señalado por los receptores lentos. Si empieza a resbalar, hay que saberlo rápido. Johansson y Westling (1987) registraron las fibras táctiles de los dedos mientras unos voluntarios levantaban un objeto pequeño entre el pulgar y el índice: pequeños deslizamientos excitaban estas fibras, y el agarre se reforzaba automáticamente en unos 74 milisegundos, aproximadamente la mitad del retraso mínimo de una corrección voluntaria.
Tres tipos de unidades podían señalar estos deslizamientos, y una de ellas pertenece a la familia lenta: las dos rápidas, más las SA I (Merkel), todas con una fuerte sensibilidad dinámica. Rápido y lento describen una tendencia de descarga, y las casillas de la tabla son menos estancas de lo que parece.
Para la mano, la síntesis de Johnson (2001) concluye que cada uno de los cuatro sistemas cumple una función perceptiva distinta. Para esquematizar: con receptores rápidos solamente, el cuerpo sentiría llegar el vaso y luego lo perdería de vista mientras lo sostiene.
Y bajo el pie, que carga con el cuerpo buena parte del día, ¿se parece el reparto al de la mano?
Mecanorreceptores de la planta del pie: 71 % de unidades rápidas
Kennedy e Inglis (2002) registraron una a una las fibras sensitivas de la planta del pie en 13 adultos. De 104 unidades: 57 % FA I, 14 % FA II, 14 % SA I y 15 % SA II, es decir, 71 % de unidades de adaptación rápida. Estaban repartidas por toda la planta, sin concentración en los dedos, y ninguna descargaba espontáneamente en un pie sin carga.
La mano sigue otra lógica. Sobre 334 unidades, Johansson y Vallbo (1979) encuentran una densidad que aumenta de la palma a la yema de los dedos, de 58 a unas 241 unidades por centímetro cuadrado según su modelo. En cuanto a las proporciones, Purves plantea para la mano alrededor de un 40 % de Meissner, un 25 % de Merkel, un 20 % de Ruffini y un 10 a 15 % de Pacini.
Estas cifras valen para la mano, las de Kennedy e Inglis para el pie, y no se intercambian. Los propios autores señalan que los receptores plantares «behave differently from those receptors found on the glabrous skin of the hand» (Kennedy e Inglis, 2002), y relacionan esta diferencia con el papel del pie en el equilibrio.
Una planta dominada por sensores del cambio debería perder rápido el hilo de un apoyo inmóvil. Es nuestra lectura de las cifras, que ninguno de los estudios citados midió tal cual.
El huso neuromuscular también se adapta: respuesta dinámica y respuesta estática
La propiocepción sigue la misma lógica. El huso neuromuscular, sensor de estiramiento situado en paralelo a las fibras del músculo, lleva dos terminaciones. La primaria, conectada a una fibra Ia, responde a la longitud y sobre todo a la velocidad de alargamiento; la secundaria, conectada a una fibra del grupo II, informa sobre todo de la longitud (Purves et al., 2004, cap. 8). En el ser humano, Macefield y Knellwolf (2018) precisan que ambas son sensibles tanto a la longitud como a la velocidad, y que la primaria conserva la mayor sensibilidad dinámica.
A diferencia de los sensores de la piel, el huso recibe su propia orden motora, las motoneuronas gamma, que regulan su sensibilidad (Enoka, 2008, cap. 7). El resto de la familia está en nuestro artículo sobre los sensores propioceptivos.
Queda una pregunta que el experimento de la mano deja abierta: ¿el palidecimiento venía solo de la piel?
Adaptación sensorial o habituación: la prueba de la deshabituación
Ambas hacen bajar una respuesta, y a menudo se confunden. La adaptación se juega en el receptor, cuya terminación descarga menos. La habituación se juega más lejos, en las sinapsis centrales; en la Aplysia, Castellucci y Kandel (1974) la vincularon con una menor liberación de neurotransmisor por parte de la neurona sensorial, conservando la neurona diana su sensibilidad.
Para distinguirlas, Rankin y sus colegas (2009), que revisaron la definición de habituación, retienen la deshabituación. Presentas un estímulo nuevo, en otra zona, y luego vuelves al estímulo de partida. Si la respuesta sube, el receptor no era el cuello de botella, puesto que nada lo tocó entretanto: la bajada era de habituación. Si se mantiene baja, la adaptación, o una fatiga de la respuesta motora, sigue sobre la mesa.
Tu prueba de la mesa mezcla sin duda ambas, en una proporción que no permite cuantificar.
Lo que la adaptación de los receptores cambia para tu sesión y tu medición
Un apoyo inmóvil mantenido mucho tiempo acaba hablando solo a los receptores lentos. La variación y el movimiento despiertan a los rápidos, y bajo el pie son los más numerosos. Cada receptor tiene su estímulo preferente, lo que llamamos su valencia: elegir una estimulación es elegir a quién te diriges. Que un estímulo variado mantenga mejor a raya la adaptación, ningún estudio citado aquí lo ha probado.
La otra consecuencia afecta a la medición. Evaluar la sensibilidad, el apoyo o el equilibrio de una persona justo después de una presión sostenida equivale a medir en parte un receptor en adaptación, quizá una habituación central. Un efecto inmediato no prueba nada; en nuestras profesiones, lo que cuenta es el retest a distancia, y eso se construye mediante la programación. Nuestra rejilla lo dice en tres tiempos: leer dónde está el cuerpo a oscuras, volver a encender la entrada que falta, hacer que se sostenga. La adaptación explica por qué el segundo tiempo se ve a menudo en el minuto, y por qué el tercero solo se juzga en el retest.
Podemos equivocarnos, y se puede comprobar: la sensibilidad al roce de una zona de la planta debería bajar justo después de treinta segundos de apoyo inmóvil y recuperar su valor de partida a los diez minutos. Una bajada todavía clara al día siguiente, en las mismas condiciones, señalaría algo distinto de una adaptación y una habituación a corto plazo.
Afirmación | Nivel de evidencia | Fuente |
|---|---|---|
71 % de unidades rápidas en la planta | Establecido, 104 unidades, 13 adultos | Kennedy e Inglis |
Deslizamiento señalado por FA I, FA II y SA I | Establecido para la mano | Johansson y Westling |
Medición sesgada justo después de un apoyo sostenido | Deducción, no cuantificada | La lectura RNP |
Lo que la investigación sobre la adaptación aún no resuelve
Se ignora cuánto tardan en recuperarse los receptores de la planta tras un apoyo prolongado en una persona de pie, y Kennedy e Inglis registraron un pie sin carga. Tampoco se sabe si el entrenamiento modifica la propia adaptación, ni cómo se reparte, de una persona a otra, la parte del receptor y la del cerebro.
Repite esta noche el experimento de la mano y cuenta cuántas de tus pruebas de sesión caen justo después de diez segundos de inmovilidad.
Justo después de un apoyo sostenido, mides un receptor que se recupera; solo al día siguiente mides lo que se sostuvo.
👉 Quiero intervenir en el lugar adecuado
Preguntas frecuentes
¿Qué es la adaptación sensorial?
La disminución de la descarga de un receptor sometido a un estímulo que ya no cambia. Se produce en el propio sensor, antes de cualquier sinapsis central.
¿Qué diferencia hay entre receptores fásicos y tónicos?
Los fásicos, de adaptación rápida (Meissner, Pacini), descargan al comienzo y al final de un estímulo. Los tónicos, de adaptación lenta (Merkel, Ruffini), descargan mientras dura.
¿La planta del pie tiene los mismos receptores que la mano?
Las mismas familias, en otras proporciones: 71 % de unidades rápidas en la planta (Kennedy e Inglis, 2002). Las cifras de la mano no se trasladan al pie.
¿Cómo saber si una bajada de la respuesta viene del receptor o del cerebro?
Mediante la deshabituación: un estímulo nuevo y luego vuelta al estímulo de partida. Si la respuesta regresa, la bajada era central (Rankin et al., 2009).
Por el equipo de LabO RNP
LabO RNP no es una estructura médica ni paramédica. Nuestros enfoques se suman a un recorrido de cuidados, nunca lo sustituyen.
Referencias
Purves D, Augustine GJ, Fitzpatrick D, et al. Neuroscience, 3.ª ed. Sunderland (MA): Sinauer Associates; 2004. Capítulo 8 (sistema somatosensorial).
Enoka RM. Neuromechanics of Human Movement, 4.ª ed. Champaign (IL): Human Kinetics; 2008. Capítulo 7.
Johansson RS, Westling G. Signals in tactile afferents from the fingers eliciting adaptive motor responses during precision grip. Exp Brain Res. 1987;66(1):141-154. doi:10.1007/bf00236210. PMID 3582528.
Johnson KO. The roles and functions of cutaneous mechanoreceptors. Curr Opin Neurobiol. 2001;11(4):455-461. doi:10.1016/s0959-4388(00)00234-8. PMID 11502392.
Kennedy PM, Inglis JT. Distribution and behaviour of glabrous cutaneous receptors in the human foot sole. J Physiol. 2002;538(3):995-1002. doi:10.1113/jphysiol.2001.013087. PMID 11826182.
Johansson RS, Vallbo AB. Tactile sensibility in the human hand: relative and absolute densities of four types of mechanoreceptive units in glabrous skin. J Physiol. 1979;286:283-300. doi:10.1113/jphysiol.1979.sp012619. PMID 439026.
Macefield VG, Knellwolf TP. Functional properties of human muscle spindles. J Neurophysiol. 2018;120(2):452-467. doi:10.1152/jn.00071.2018. PMID 29668385.
Castellucci V, Kandel ER. A quantal analysis of the synaptic depression underlying habituation of the gill-withdrawal reflex in Aplysia. Proc Natl Acad Sci USA. 1974;71(12):5004-5008. doi:10.1073/pnas.71.12.5004. PMID 4373738.
Rankin CH, Abrams T, Barry RJ, et al. Habituation revisited: an updated and revised description of the behavioral characteristics of habituation. Neurobiol Learn Mem. 2009;92(2):135-138. doi:10.1016/j.nlm.2008.09.012. PMID 18854219.
Leer a continuación
Sensores sensoriales - Propriocepción
Pirámide del aprendizaje y posturología: la postura, un nivel que sostiene
Pirámide del aprendizaje y posturología: la postura en los niveles 3 y 4, sus sensores, su relación con la atención y la mirada, y el nivel de evidencia.
Leer el artículo Sensores sensoriales - PropriocepciónLos sistemas sensoriales de la pirámide de los aprendizajes: por qué los sentidos del cuerpo van primero
Sistemas sensoriales de la pirámide de los aprendizajes: táctil, vestibular y propioceptivo, habituación, interocepción y su lectura en el atleta.
Leer el artículo Sensores sensoriales - PropriocepciónRoce, presión rítmica, presión profunda: por qué una misma estimulación táctil no funciona igual en todos
Roce, presión rítmica o profunda, vibración: cada receptor táctil tiene su estímulo preferente. Por qué el mismo gesto divide las respuestas.
Leer el artículo¿Listo para leer el bucle antes del gesto?
El sistema RNP se lee, se enfoca y se pone a prueba desde tu próximo balance. Empieza por el espacio de miembros, gratis.