Teoría de la compuerta (Melzack y Wall): por qué frotar calma y lo que se le hace decir
Melzack y Wall, 1965: el tacto frena las señales nociceptivas en la médula. Qué se ha sostenido, qué se corrigió y qué se le hace decir sin razón.
El espacio de formación RNP, gratis de por vida
Accede a las formaciones RNP, sin compromiso.
Un codo golpeado, una mano que frota sin pensarlo. De ahí sacaron Melzack y Wall una teoría en 1965: su esquema se ha corregido desde entonces, su principio se ha sostenido, y se le hace cargar con mucho más de lo que demuestra.
Hola a ti, el profesional del movimiento,
Atraviesas la puerta algo deprisa y la punta del codo choca contra el marco. Una descarga caliente baja hasta los dedos, que hormiguean. Tu mano ya está encima, plana, frotando en pequeños círculos antes de que hayas decidido nada. La sensación va cediendo. Sueltas, vuelve a subir un poco, así que frotas otra vez.
La teoría de la compuerta, publicada en 1965 por Ronald Melzack y Patrick Wall, propone que la actividad de las fibras gruesas del tacto, las que tu mano recluta al frotar, frena en la médula espinal la transmisión de las señales nociceptivas procedentes de la misma zona (Melzack y Wall, 1965; Purves et al., 2004, cap. 9). Frotar modula lo que sube hacia el cerebro, mientras frotas. La teoría no dice nada de lo que ocurre una vez retirada la mano.
En nuestro artículo sobre las cosquillas que se apagan tras treinta segundos de presión, la compuerta figuraba entre cuatro mecanismos, aplicada a las cosquillas por extrapolación. Merece un artículo propio: es probablemente la teoría más citada para explicar que una mano apoyada calma, y una de las más estiradas.
1965: la teoría de la compuerta frente a la idea de una línea directa
La idea dominante, la teoría de la especificidad cuya historia trazan Moayedi y Davis (2013), sostenía que un estímulo nocivo sigue una línea dedicada hasta un centro cerebral, y que lo que se siente refleja fielmente lo que ocurre. Melzack resumiría más tarde de qué hubo que salir: una relación simple, término a término, entre el daño y la sensación (Melzack, 1999).
Los datos se atascaban, recuerda Mendell (2014): pocas neuronas sensitivas respondían de forma selectiva a los estímulos intensos, mientras que había que activar las fibras finas de un nervio para que un estímulo se describiera como lo bastante desagradable como para doler. Melzack y Wall propusieron responder con un mecanismo entonces novísimo, el control presináptico: frenar un mensaje antes incluso de que pase de una neurona a la siguiente.
Fibras gruesas, asta dorsal, interneuronas: el mecanismo de la compuerta
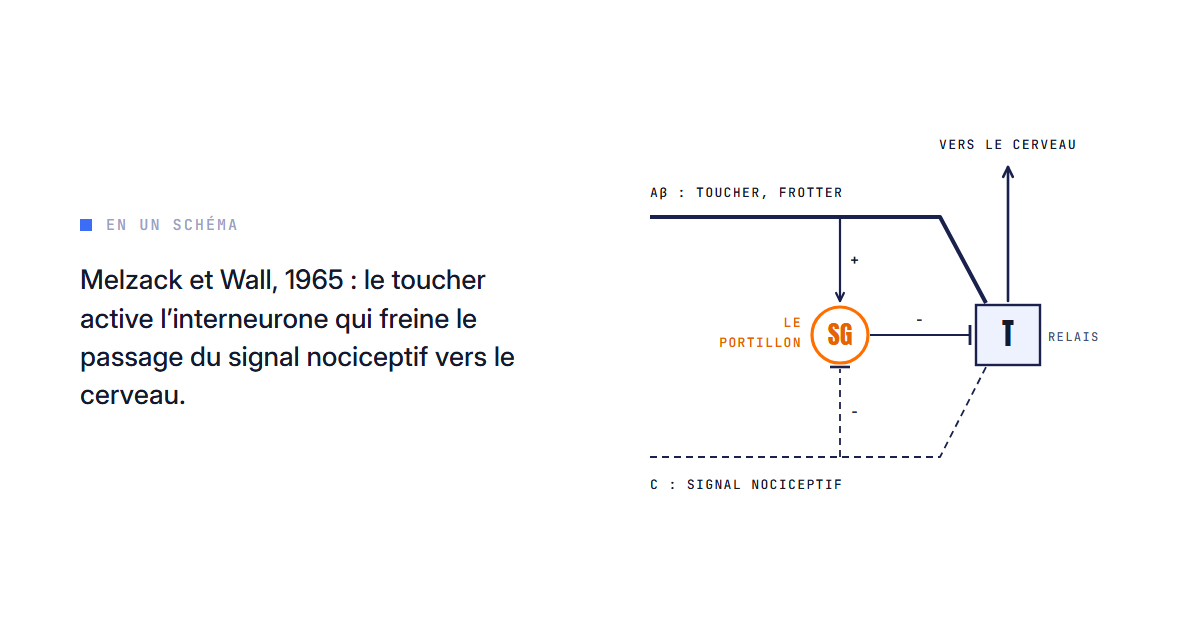
En el asta dorsal de la médula, adonde llegan las fibras sensitivas, unas neuronas de transmisión reciben las fibras finas, portadoras de las señales nociceptivas, y las fibras gruesas mielinizadas del tacto. Unas interneuronas de la sustancia gelatinosa hacen de compuerta (Melzack y Wall, 1965). Las fibras gruesas tienden a cerrarla, las finas a abrirla, y su equilibrio regula lo que pasa hacia el cerebro (Mendell, 2014; Braz et al., 2014).
Estas fibras gruesas parten de los mecanorreceptores cutáneos, entre ellos los corpúsculos de Meissner y de Pacini, muy sensibles a lo que se mueve sobre la piel: tu mano sobre el codo fabrica exactamente ese deslizamiento, esa presión que cambia sin parar. Los manuales describen hoy fibras táctiles que activan interneuronas inhibidoras locales, las cuales frenan las neuronas de proyección nociceptivas (Purves et al., 2004, cap. 9). Estas entradas alimentan además de forma permanente el bucle sensoriomotor.
La tercera pieza suele desaparecer de las citas: unas vías descendentes, procedentes del cerebro, que modifican el ajuste de la compuerta (Mendell, 2014). Desde entonces se conocen centros del tronco encefálico, entre ellos la sustancia gris periacueductal, que facilitan o inhiben la transmisión en el asta dorsal, y a través de los cuales pesan el contexto y las expectativas de la persona (Purves et al., 2004, cap. 9). Lo que sube hacia el cerebro depende también de lo que el cerebro envía hacia abajo.
Sesenta años después, ¿qué queda de este dibujo?
Lo que se ha confirmado, lo que se ha corregido desde 1965
El esquema fue atacado pronto. En humanos, Nathan y Rudge (1974) estimulan eléctricamente las fibras gruesas de un nervio sin cambiar nada en las sensaciones transportadas por las fibras C solas, y juzgan sus resultados incompatibles con la teoría. El propio Wall publica un reexamen y una reformulación de su modelo (Wall, 1978). Mendell zanja en 2014: «the model is not correct in detail». La interneurona única del dibujo ha dado paso a una lista cada vez más larga de poblaciones distintas (Braz et al., 2014).
La idea general, en cambio, se ha sostenido. En el ratón, Duan y sus colegas (2014) identificaron genéticamente neuronas inhibidoras de la médula necesarias para impedir que las fibras táctiles activen las neuronas de la nocicepción mecánica. En el humano despierto, un contacto simultáneo a un estímulo láser nociceptivo disminuye la sensación (Mancini et al., 2014) y reduce un reflejo de parpadeo generado por el tronco encefálico, lo que sitúa, según los autores, el freno probablemente por debajo de la corteza (Mancini et al., 2015).
Un último trabajo complica el cuadro, y es el que más nos gusta. En el primate, Davidson y sus colegas (2009) registraron neuronas que suben de la médula al tálamo: el rascado las inhibía cuando una sustancia que provoca picor las activaba, pero no durante su actividad espontánea, ni bajo un estímulo nociceptivo. Picor y cosquillas son dos cosas distintas, pero quien haya sentido que unas cosquillas ligeras daban ganas de rascarse reconocerá la idea: el mismo gesto frena o deja pasar según el estado del circuito.
Lo que se afirma | Dónde se ha mostrado | Nivel de evidencia |
|---|---|---|
El tacto frena la transmisión nociceptiva en la médula | Ratón (Duan, 2014) | Establecido en el animal |
Un contacto simultáneo disminuye la sensación nociceptiva | Humano despierto (Mancini, 2014; 2015) | Establecido, durante el contacto |
El cableado de 1965 | Revisiones (Mendell, 2014; Braz, 2014) | Corregido en el detalle |
El freno depende del estado del circuito | Primate (Davidson, 2009) | Establecido para el picor |
Un efecto que dura tras el contacto | Ninguno de estos trabajos | No demostrado |
De la compuerta a la neuromatriz de Melzack
Para Melzack, la principal aportación de la compuerta está en la mirada: obligó a ver el cerebro como un sistema activo que filtra y modula lo que recibe, y el asta dorsal como un lugar de modulación más que un relevo pasivo (Melzack, 1999). Prolongó la idea con la neuromatriz, una red cerebral ampliamente distribuida que integra múltiples entradas y produce una salida, la neurofirma. La entrada sensorial es solo una de las influencias, y una neurofirma puede incluso nacer sin ella (Melzack, 2001).
El propio Melzack la presentaba como una propuesta. Aun así desplaza la pregunta: si la entrada táctil es solo una voz entre otras, hacerla hablar más fuerte unos minutos no cambia lo que el sistema producirá la semana siguiente.
Entonces, ¿por qué la compuerta vuelve tan a menudo para justificar lo que ocurre bajo las manos?
Técnicas manuales y teoría de la compuerta: lo que permite afirmar
El atractivo se entiende: un mecanismo con nombre, que cabe en un dibujo, para un efecto que todo el mundo ha sentido en su propio codo. Toda técnica manual que calma en el momento encuentra ahí una explicación lista para usar. Lo que la teoría permite afirmar es, sin embargo, preciso: una estimulación táctil sobre una zona, o muy cerca de ella, puede modular la transmisión de las señales nociceptivas de esa zona mientras tiene lugar, y probablemente un breve momento después. Los experimentos en humanos miden un contacto simultáneo, nada más allá. Puedes usarla para explicar que una persona se sienta más a gusto al final de una sesión, siempre que te detengas ahí.
Lo que la teoría de la compuerta no permite afirmar
No dice nada de un cambio duradero. Cuando la mano se va, el equilibrio se redibuja con las entradas que quedan, tu codo te lo ha mostrado. Ninguno de los trabajos citados aquí mide un efecto del frotamiento a las veinticuatro horas.
Ahí es donde el antes y después inmediato nos engaña a todos, a nosotros incluidos, durante años: una persona que se siente mejor al salir, la compuerta basta para explicarlo, sin que el sistema haya aprendido nada. La duración del efecto de una estimulación se mide, no se deduce de lo que se siente en el momento. En el principio prueba, estimulación, reprueba, la reprueba que cuenta llega la semana siguiente, cuando no se ha estimulado nada justo antes. Leer dónde está el cuerpo a oscuras y volver a encender una entrada puede producir un efecto el mismo día; hacer que se sostenga se construye con la programación, y se juzga con un antes y después mirado tres semanas más tarde.
Nuestra predicción, para que la compruebes tú mismo: frota una zona, mide su sensibilidad a una presión estándar durante el frotamiento, a los diez minutos y al día siguiente, frente al lado opuesto dejado en paz. La diferencia debería ser clara durante el contacto y luego borrarse en unos minutos; si se mantuviera al día siguiente, medida a ciegas, la compuerta sola ya no la explicaría.
Las preguntas que la compuerta deja abiertas
Se ignora qué parte corresponde al filtrado espinal y qué parte a los controles descendentes en un simple frotamiento, parte que sin duda varía de una persona a otra. Se ignora también si unas estimulaciones táctiles repetidas durante semanas cambian de forma duradera la manera en que un sistema lee una zona; solo un estudio con reprueba a distancia lo dirá.
Frotar cierra la compuerta el tiempo del gesto. Lo que sigue sosteniéndose la semana siguiente, solo la reprueba puede mostrarlo.
👉 Quiero intervenir en el lugar adecuado
Preguntas frecuentes sobre la teoría de la compuerta
¿Qué es la teoría de la compuerta de Melzack y Wall?
Publicada en 1965, propone que las fibras gruesas del tacto frenan, en el asta dorsal de la médula, la transmisión de las señales nociceptivas, bajo el control del cerebro.
¿Por qué frotar el sitio donde nos hemos golpeado calma la sensación?
Frotar activa las fibras gruesas de los mecanorreceptores de la piel, que reclutan interneuronas inhibidoras en la médula, durante el contacto.
¿Sigue siendo válida la teoría de la compuerta?
Su principio se ha confirmado en el animal y en el humano. Su cableado de 1965 se ha corregido, y el propio Melzack la prolongó con la neuromatriz.
¿Puede durar un efecto obtenido con una técnica manual gracias a la compuerta?
La teoría describe una modulación durante la estimulación, nada más. Para saber si algo se sostiene, hace falta una reprueba a distancia, idealmente la semana siguiente.
Por el equipo de LabO RNP
LabO RNP no es una estructura médica ni paramédica. Nuestros enfoques se suman a un recorrido asistencial, nunca lo sustituyen.
Referencias
Melzack R, Wall PD. Pain mechanisms: a new theory. Science. 1965;150(3699):971-979. doi:10.1126/science.150.3699.971. PMID 5320816.
Purves D, Augustine GJ, Fitzpatrick D, et al. Neuroscience, 3.ª ed. Sunderland (MA): Sinauer Associates; 2004. Capítulo 9 (nocicepción).
Moayedi M, Davis KD. Theories of pain: from specificity to gate control. J Neurophysiol. 2013;109(1):5-12. doi:10.1152/jn.00457.2012. PMID 23034364.
Melzack R. From the gate to the neuromatrix. Pain. 1999;Suppl 6:S121-S126. doi:10.1016/s0304-3959(99)00145-1. PMID 10491980.
Mendell LM. Constructing and deconstructing the gate theory of pain. Pain. 2014;155(2):210-216. doi:10.1016/j.pain.2013.12.010. PMID 24334188.
Braz J, Solorzano C, Wang X, Basbaum AI. Transmitting pain and itch messages: a contemporary view of the spinal cord circuits that generate gate control. Neuron. 2014;82(3):522-536. doi:10.1016/j.neuron.2014.01.018. PMID 24811377.
Nathan PW, Rudge P. Testing the gate-control theory of pain in man. J Neurol Neurosurg Psychiatry. 1974;37(12):1366-1372. doi:10.1136/jnnp.37.12.1366. PMID 4449001.
Wall PD. The gate control theory of pain mechanisms. A re-examination and re-statement. Brain. 1978;101(1):1-18. doi:10.1093/brain/101.1.1. PMID 205314.
Duan B, Cheng L, Bourane S, et al. Identification of spinal circuits transmitting and gating mechanical pain. Cell. 2014;159(6):1417-1432. doi:10.1016/j.cell.2014.11.003. PMID 25467445.
Mancini F, Nash T, Iannetti GD, Haggard P. Pain relief by touch: a quantitative approach. Pain. 2014;155(3):635-642. doi:10.1016/j.pain.2013.12.024. PMID 24361816.
Mancini F, Beaumont AL, Hu L, Haggard P, Iannetti GD. Touch inhibits subcortical and cortical nociceptive responses. Pain. 2015;156(10):1936-1944. doi:10.1097/j.pain.0000000000000253. PMID 26058037.
Davidson S, Zhang X, Khasabov SG, Simone DA, Giesler GJ. Relief of itch by scratching: state-dependent inhibition of primate spinothalamic tract neurons. Nat Neurosci. 2009;12(5):544-546. doi:10.1038/nn.2292. PMID 19349977.
Melzack R. Pain and the neuromatrix in the brain. J Dent Educ. 2001;65(12):1378-1382. doi:10.1002/j.0022-0337.2001.65.12.tb03497.x. PMID 11780656.
Leer a continuación
Definiciones del bucle sensoriomotor: principios fundamentales del control postural
Pirámide de los aprendizajes y neurología funcional: la neuromecánica que el esquema simplifica
Pirámide de los aprendizajes y neurología funcional: tronco encefálico, cerebelo, estabilidad refleja proactiva y retroactiva, la neuromecánica del esquema.
Leer el artículo Definiciones del bucle sensoriomotor: principios fundamentales del control posturalPirámide de Dale: de dónde salen los porcentajes de la pirámide del aprendizaje
Pirámide de Dale: Edgar Dale nunca publicó los porcentajes (10 % lo leído, 90 % lo enseñado). Su origen real, las refutaciones y lo que dice la investigación.
Leer el artículo Definiciones del bucle sensoriomotor: principios fundamentales del control posturalLa pirámide de los aprendizajes de Williams y Shellenberger: los 5 niveles, su origen y sus límites
Pirámide de los aprendizajes de Williams y Shellenberger: los 5 niveles, las 22 competencias, su origen (Taylor y Trott, 1991) y sus límites.
Leer el artículo¿Listo para leer el bucle antes del gesto?
El sistema RNP se lee, se enfoca y se pone a prueba desde tu próximo balance. Empieza por el espacio de miembros, gratis.